甲状腺激素触发“视觉蛋白切换”,启动原始脊椎动物的蜕变
作者: aeks | 发布时间: 2026-11-15 09:07 | 更新时间: 2026-11-15 09:07
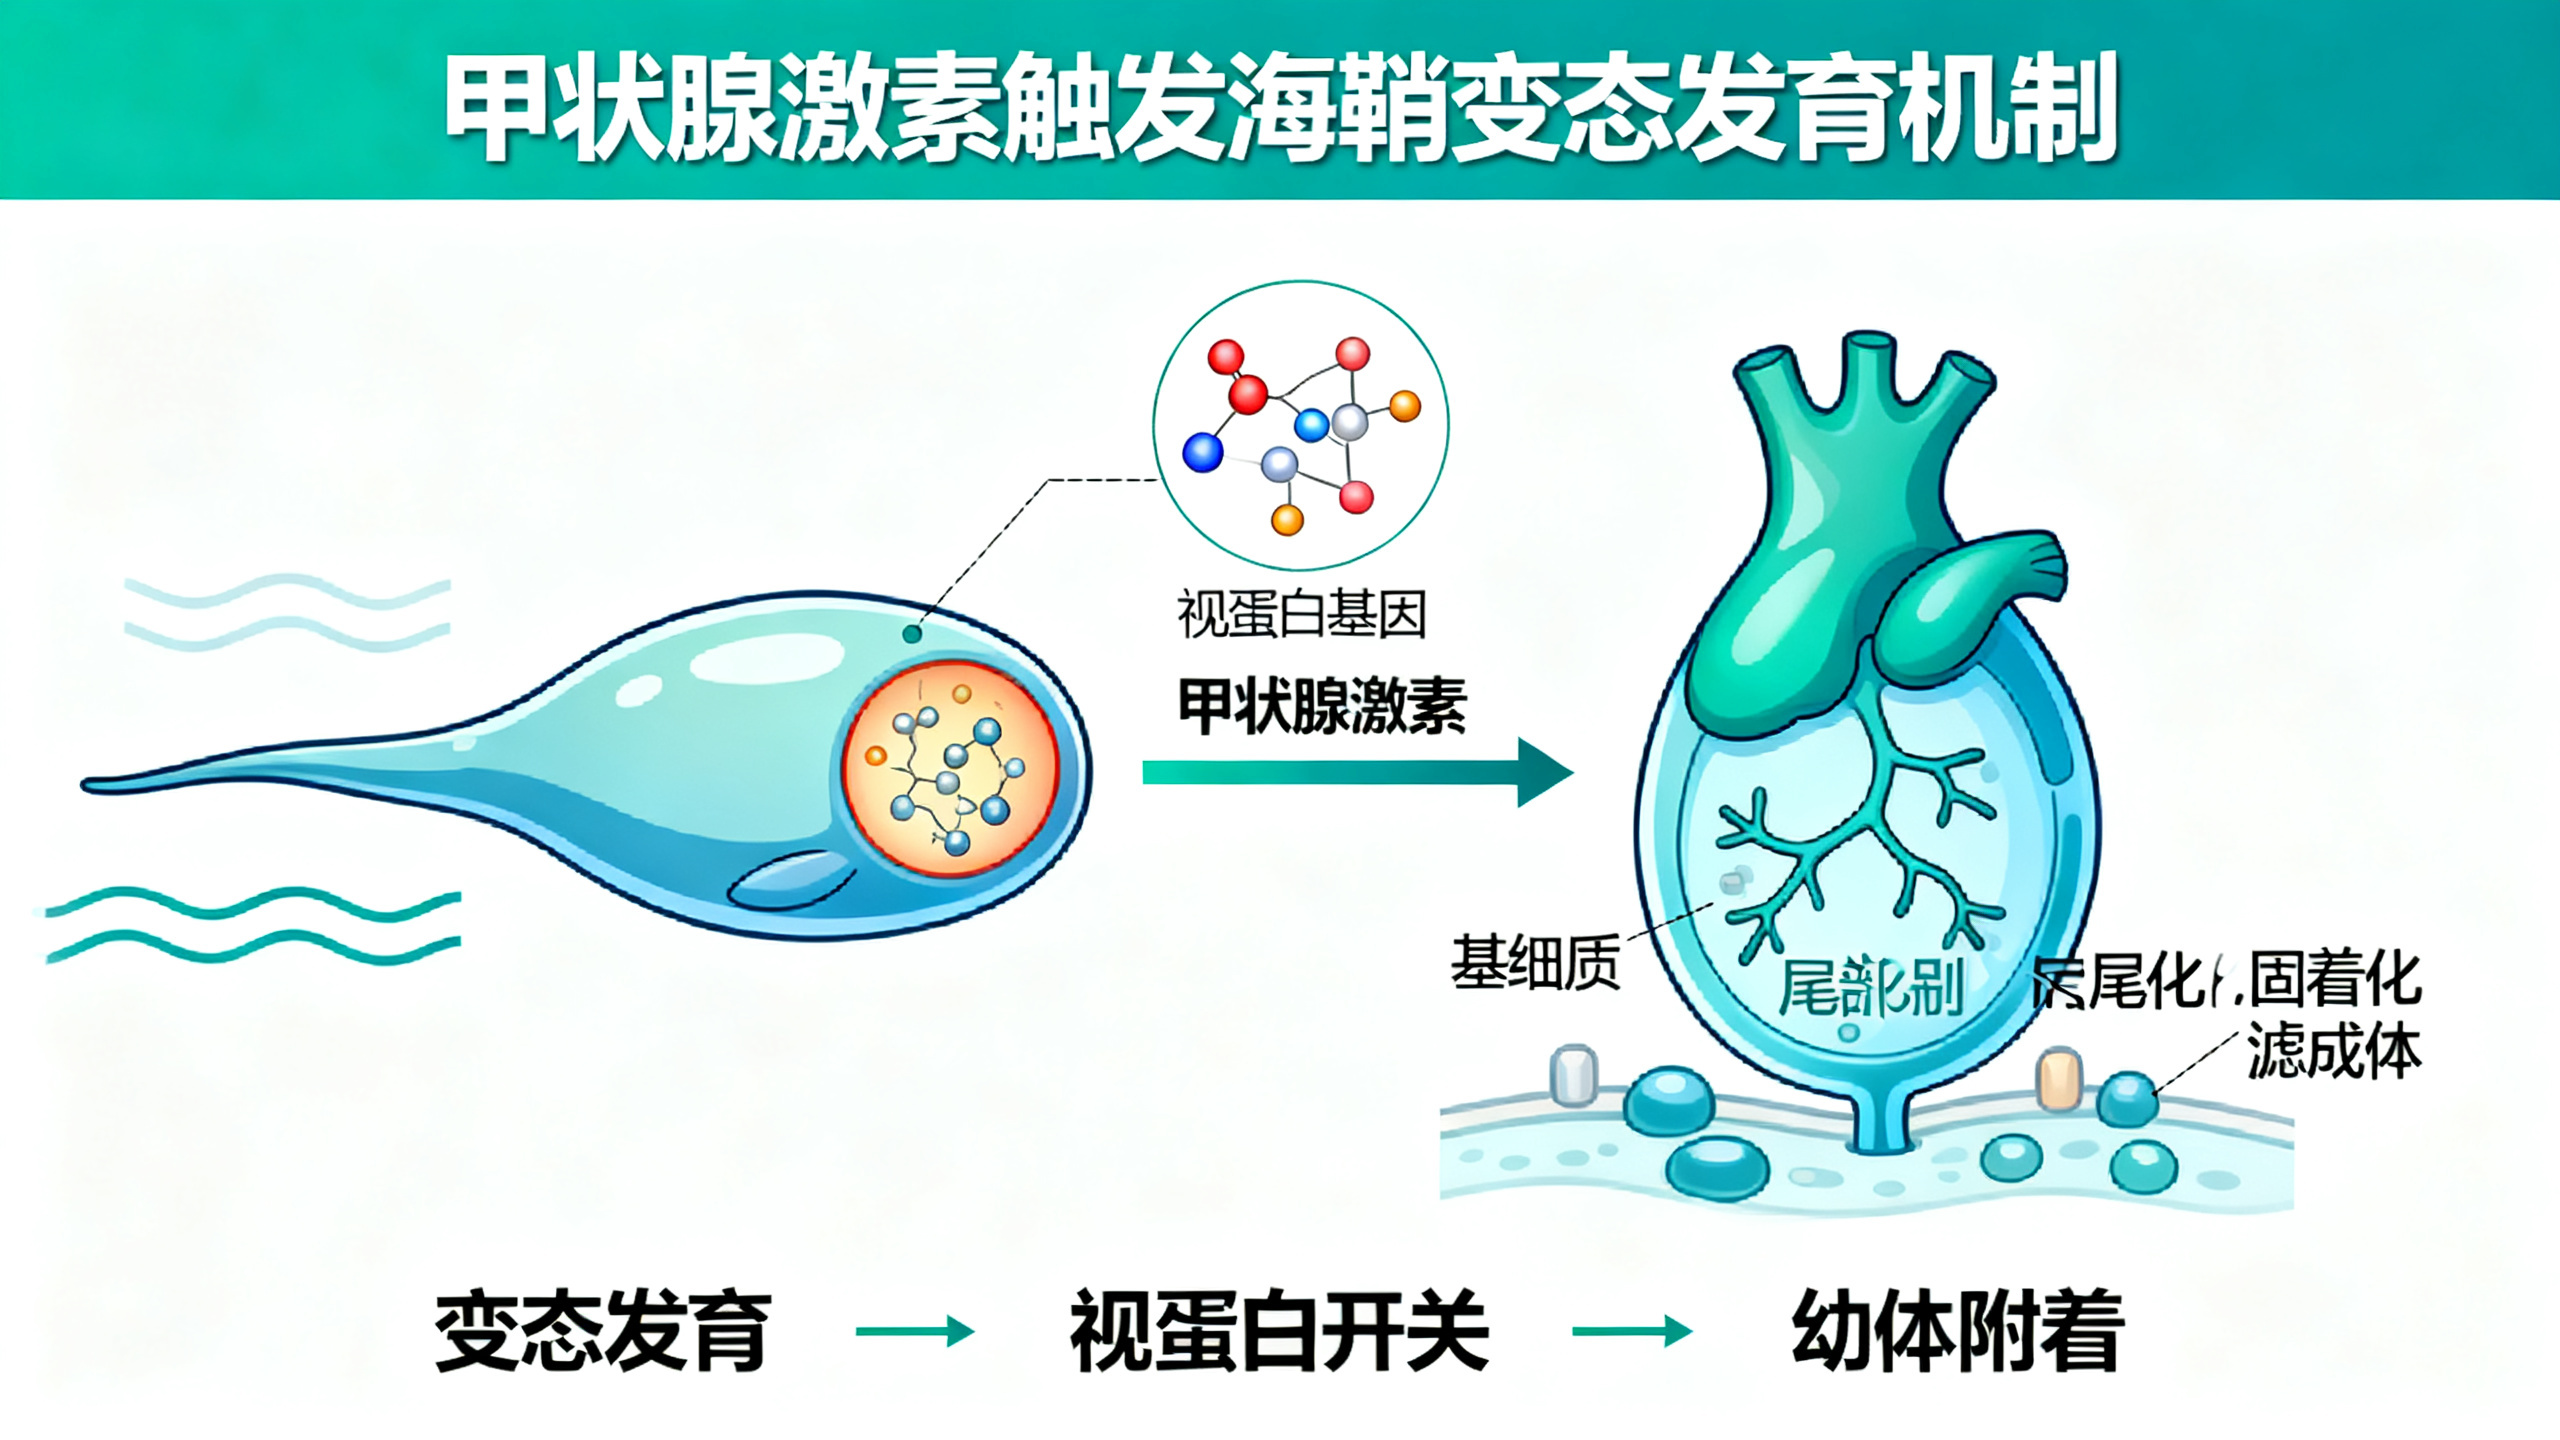
《甲状腺激素介导的视蛋白开关启动原始脊椎动物近亲海鞘的变态发育》由 Andrea Mariossi 与 Michael S. Levine 发表于 Science Advances。本文面向大众解释这篇论文的核心发现:海鞘是一种与脊椎动物亲缘关系很近的脊索动物。它的幼虫会游泳,身体有脊索、背神经管和尾部肌肉,类似原始脊椎动物的体型;完成变态后,它会固着在环境中,变成滤食生活的成体。研究表明,甲状腺激素不仅负责动物激素调控,而且能在海鞘中启动这一过程。\n\n一、背景与问题\n在脊椎动物中,甲状腺激素通常启动变态发育,例如两栖类和比目鱼的幼体向成体转变时,会经历组织重建、行为改变和栖息地转换。甲状腺激素还能影响色素、视网膜感光细胞分化、孵化和代谢。过去研究集中在脊椎动物,但这一调控系统的演化起源不清。海鞘作为现存脊椎动物最近的近亲之一,基因组小、细胞数目少、幼虫透明,便于观察发育,是理解甲状腺信号和脊索动物发育的理想简化模型。海鞘的咽部内柱能富集碘,被认为可能演化出脊椎动物的甲状腺;但海鞘是否利用类似甲状腺激素控制发育开始,过去证据不完整。\n\n二、主要结论\n研究团队发现,海鞘拥有多数甲状腺激素加工基因,包括激素合成、碘转运、核受体结合和组织特异调控等组件。海鞘没有脊椎动物典型下丘脑—垂体—甲状腺轴的全部基因,但内柱和卵巢有类 TSH 样活性。单一甲状腺核受体基因 Thr 在神经管时期的内胚层开始表达,在游泳幼虫阶段达到高峰。外源甲状腺素 T4 能提前触发尾部退化,加速变态;抑制甲状腺激素合成或激活的药物会延迟或阻断变态。T4 对海鞘的重要性高于另一激素 T3,这与多数脊椎动物以 T3 为主要活性激素形成对照。\n\n三、附着是第一个激素控制节点\n海鞘变态的第一步是幼虫从自由游泳转为附着,随后尾部退化、身体重建。实验表明,连续用 T4 处理会缩短自由游泳期,使幼虫更早附着。仅在孵化前后短暂加入 T4 也足以提前触发附着,说明 T4 水平的变化像一道门,决定发育阶段是否转换。相比之下,附着之后的 T4 处理主要加速尾部退化。因此,附着是主要对 T4 敏感的发育检查点,尾部退化是其下游事件。\n\n四、内胚层与甲状腺调控网络\n海鞘内胚层约 500 个细胞,包括躯干内胚层和尾部内胚层条索。变态开始时,这些细胞会向躯干迁移,然后尾部退化。Thr 在尾部内胚层条索中表达,提示它可能控制尾部退化的时间。实验发现,过量表达 Thr 会加速内胚层条索细胞向躯干迁移;使 Thr 变成抑制形式则会延迟或阻断迁移。另一个关键因子 Hox10 与这一迁移关系密切:过量表达 Hox10 或抑制 Hox10 会产生与激活或抑制 Thr 类似的效果,并且过量表达 Hox10 能挽救 Thr 被抑制造成的迁移缺陷。由此支持一个模型:Thr 通过调节 Hox10 控制内胚层迁移和尾部退化时间。\n\n甲状腺相关转录因子也与脊椎动物相似。脊椎动物甲状腺祖细胞共同表达 Nkx2.1、Foxe1、Pax2/5/8 和 Hhex。海鞘中,除 Hhex 外的这些基因大多参与内柱前体形成。Nkx2.1 在早期内胚层表达并标记内柱前体;Foxe1 与 Nkx2.1 在内胚层重叠;Pax2/5/8 也出现在内柱前体。进一步实验显示,Nkx2.1 直接激活 Thr 的内胚层表达,支持海鞘内柱与脊椎动物甲状腺之间保守的调控回路。\n\n五、T4 的时空分布和细胞死亡\n研究者用免疫荧光观察 T4 分布,发现游泳幼虫孵化后不久,T4 先在感觉泡中的感光细胞积累,随后到触手,再延伸到后部尾部表皮。Thr 表达也随这一顺序扩展。T4 信号与尾部表皮中细胞死亡前沿一致,并早于凋亡推进。T4 处理可增加 Caspase8 表达,并提前、增强 TUNEL 标记,说明 T4 与尾部退化中的程序性细胞死亡有关。这种头部到尾部、先附着后尾部退化的顺序,显示甲状腺信号在时间上和空间上协调多个过程。\n\n六、视蛋白开关如何控制附着\n海鞘感觉器官包括眼点和耳石,帮助幼虫根据光和重力选择扩散与定居。研究重点在眼点附近的感觉泡感光细胞。Opsin1 在早中期游泳阶段广泛表达,是幼虫趋光行为的重要分子;Opsin2 只在晚期游泳阶段少量感光细胞中短暂出现,此时幼虫行为从活跃游泳转向附着。三重原位检测发现,在 Opsin1 与 Opsin2 转换时,Thr 也短暂出现在这些感光细胞中。实验还显示,Opsin2 阳性细胞来自表达 Opsin1 的细胞。将 Thr 的激活型在 Opsin1 细胞中表达,会提前并扩大激活 Opsin2;如果破坏 Opsin2 调控区中预测的 Thr 结合位点,这种激活减弱或消失。结果说明 Opsin2 是 Thr 的直接转录靶基因。\n\n为测试这一开关是否控制附着,研究者过量表达 Opsin2,幼虫附着更快;用 CRISPR 敲低 Thr 会延迟附着;同时补充 Opsin2 能挽救延迟。因此,Opsin1 向 Opsin2 的视蛋白转换是启动附着和变态的关键步骤。\n\n七、演化意义\n研究指出,海鞘幼虫附着和鲑鱼幼鱼从淡水转向海水时的银化现象有相似之处。鲑鱼幼鱼在入海前会从紫外敏感视蛋白转向蓝色敏感视蛋白,帮助它们适应新水域;海鞘则通过甲状腺激素诱导的视蛋白转换,把光线索与激素状态结合,决定何时停止游泳并附着。该机制可能代表脊索动物中一种古老的内分泌与感官耦合策略:激素改变感官细胞的基因程序,感官细胞把环境线索转化为行为与发育决定。由于海鞘是脊椎动物的近亲,这项研究把甲状腺激素驱动视觉可塑性的起源向前推,说明这一能力早于真正的脊椎动物出现。\n\n八、方法概述\n研究主要使用海鞘 Ciona robusta。成体来自供应商,在人工海水中维持。胚胎经手术获得去壳受精,用于电转报告基因、CRISPR 扰动和激素处理。报告基因系统把增强子与荧光标记组合,在活体或固定样本中观察基因表达;分裂 GFP 用于检测 Nkx2.1 与 Thr 的空间共定位。RT-qPCR 检测基因表达变化;原位杂交链式反应 HCR 检测 mRNA 分布;T4 免疫荧光和 TUNEL 染色显示激素分布与细胞死亡;统计学用 ANOVA、Tukey 检验、卡方检验和广义线性混合模型等。RNA-seq 和蛋白质质谱数据来自公开发育数据集,用于展示基因和蛋白表达阶段。整体方法从基因调控、细胞行为、激素处理和演化比较多个层面支持结论。