微管蛋白“生产与回收”的统一机制
作者: aeks | 发布时间: 2026-11-22 06:06 | 更新时间: 2026-11-22 06:06
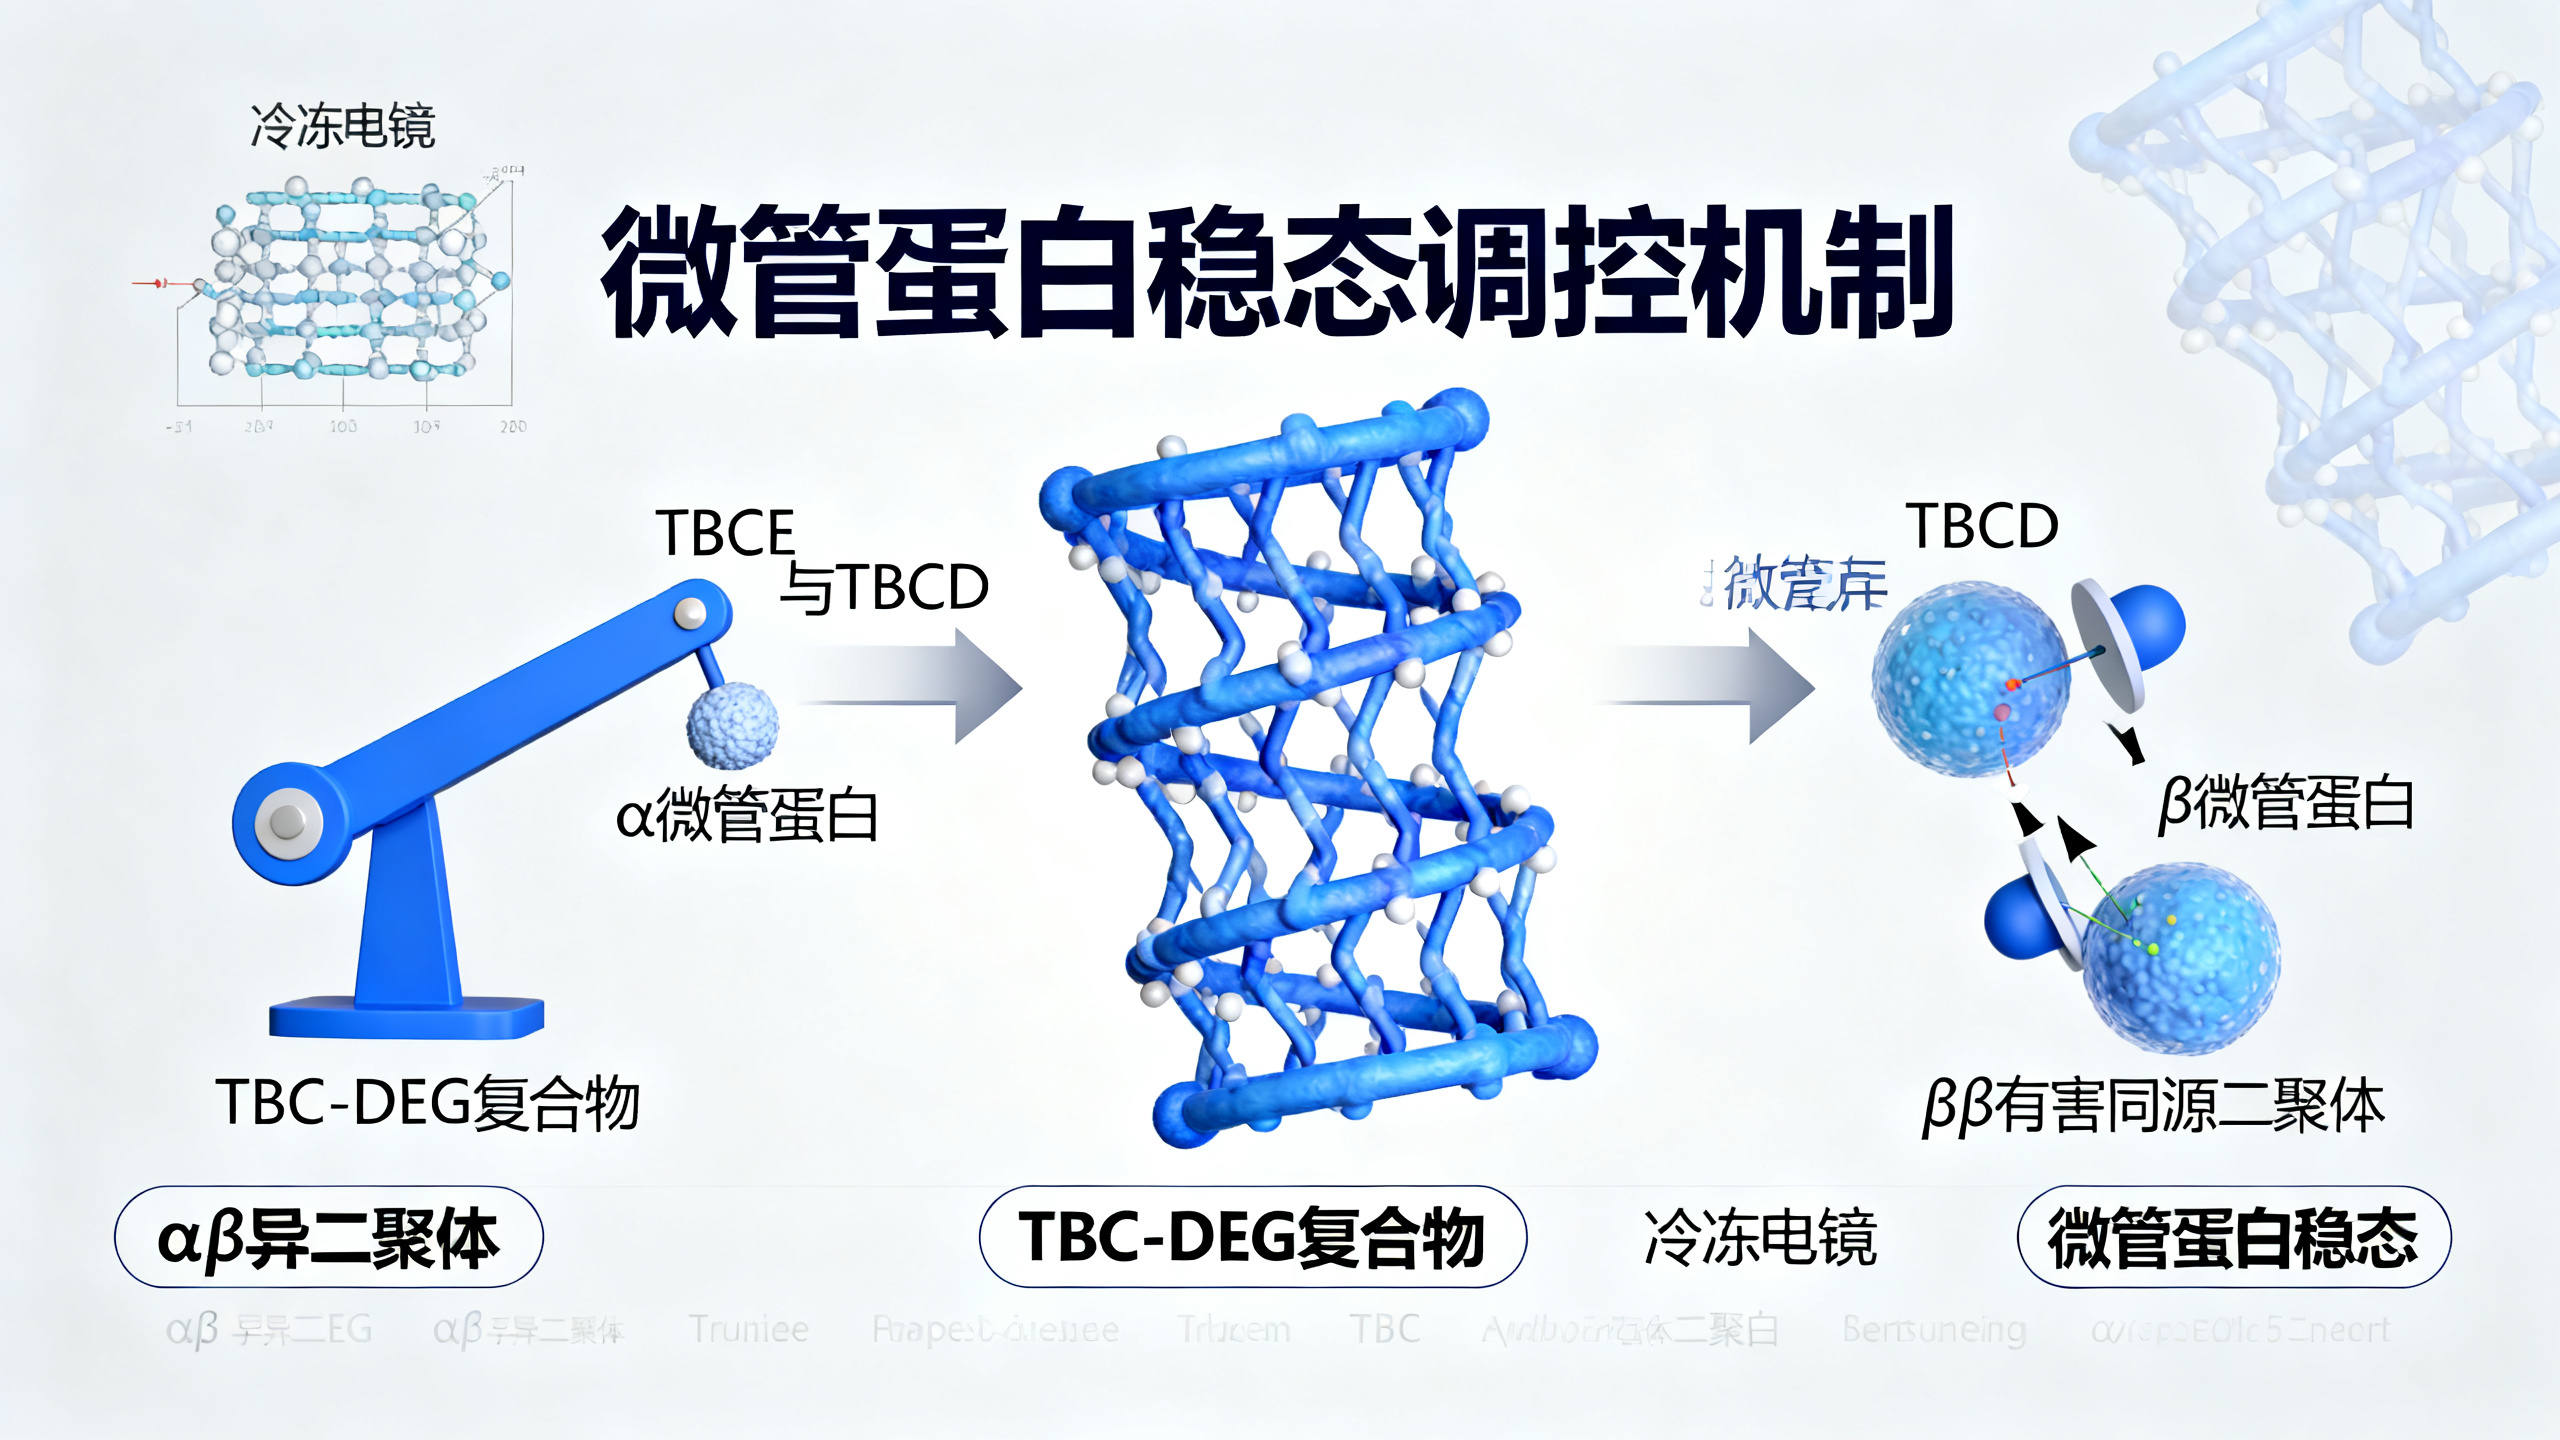
文章标题:催化α/β微管蛋白合成与降解的微管蛋白辅助因子统一机制。本文属于结构生物学研究,发表于 Science Advances,主题是细胞如何精确组装和拆解αβ微管蛋白。
摘要:微管由可溶性αβ微管蛋白异二聚体聚合形成,支持多种细胞功能。TBCC、TBCD、TBCE和Arl2 GTPase可形成TBC-DE/TBC-DEG复合物,调控α与β微管蛋白组装为异二聚体以及反向拆解,但机制尚不清楚。研究者从真核细胞中重构人源TBC-DEG/TBC-DE复合物,共纯化单聚体β微管蛋白中间体,并解析冷冻电镜结构。结构显示:TBCE通过类似杠杆臂的旋转释放α微管蛋白,同时Arl2释放核苷酸后发生大幅构象变化;TBCD牢牢抓住β微管蛋白,并通过重塑β微管蛋白H10-S8环促使α微管蛋白解离。TBC-DEG或TBC-DE与β微管蛋白的结合物还会通过β微管蛋白未被α占据的二聚界面形成背靠背ββ同源二聚体。结构比较表明,TBCE的机械旋转受Arl2 GTPase循环驱动,既能把α微管蛋白放到β微管蛋白下方,也能将其移开;TBCC通过稳定αβ微管蛋白界面调控这一方向。研究提出,TBCC/TBC-DEG催化αβ异二聚体组装可能是一种进化保护机制,用于对抗β微管蛋白在没有α微管蛋白时容易形成有害同源二聚体的倾向。
引言:微管是动态多聚体,参与细胞分裂、胞内运输以及运动纤毛和鞭毛的骨架形成。微管从细胞质中的可溶性αβ微管蛋白异二聚体池聚合而来。可溶性αβ微管蛋白浓度由反馈机制自我调控,包括SCAPER和TTC5等翻译调控蛋白。新合成的α和β微管蛋白先由prefoldin捕获,再进入TRiC/CCT分子伴侣腔室,在ATP水解循环中折叠。随后,微管蛋白辅助因子(TBC)帮助折叠后的单体组装成异二聚体。TBC既调控异二聚体的“合成”,也调控其“降解”。
该过程主要由五个保守亚基完成:TBCA、TBCB、TBCC、TBCD、TBCE,以及必需的Arl2 GTPase。TBCA和TBCB可能把新生β和α微管蛋白从CCT分子伴侣递送到由TBCC、TBCD、TBCE调控的组装路径。早期网织红细胞实验支持“线性模型”:TBCD招募β微管蛋白,TBCE招募α微管蛋白,TBCC短暂同时结合两者,驱动异二聚体合成,随后复合物解离。后来的酵母生化和共表达研究支持“循环催化伴侣模型”:TBCD、TBCE和Arl2形成稳定平台TBC-DEG,多个β微管蛋白依次在平台上组装或拆解,TBCC作为催化因子促进Arl2中的GTP水解。这些研究也确认Arl2(又称TBCG)是该路径的重要组分。微管蛋白合成和TBC通路非常重要:αβ异二聚体形成障碍会导致神经和发育疾病;TBCD、TBCE或Arl2突变与多种综合征相关。
近年冷冻电镜结构首次展示TBC复合物工作过程,但也暴露争议。酵母结构中,TBCC结合后TBCE仍与TBCD相连,只是旋转离开αβ纵向界面;人类结构则被解释为TBCE完全脱离TBCD和αβ微管蛋白,支持线性模型。要解决争议,需要理解TBCE在整个反应循环中的构象状态。
本研究结果:研究者用杆状病毒系统在人源蛋白表达真核细胞中共表达TBCD、TBCE和Arl2,或TBCD和TBCE,并在接近生理条件下纯化。人源TBC-DEG复合物由化学计量比例的TBCD、TBCE和Arl2组成,并与β微管蛋白单体共同纯化,却没有α微管蛋白。去掉Arl2时,人源TBCD和TBCE仍形成稳定TBC-DE复合物,同样与β微管蛋白结合。生化分析显示,这些复合物会少量形成二聚体,且随孵育时间增加,说明β微管蛋白单体有同源二聚化倾向。
冷冻电镜结构显示,人源TBC-DEG核心为异三聚体笼状结构:TBCD环绕β微管蛋白,TBCE沿界面结合,Arl2位于TBCD顶部。与酵母结合αβ异二聚体的结构相比,人源结合β单体的结构中Arl2没有核苷酸,GTPase域发生约180°旋转;TBCE的CapGly-LRR臂像杠杆一样向外摆动,其α微管蛋白结合位点向外移位约50埃。TBCD螺旋区与TBCE泛素样域更紧地包裹β微管蛋白,使β微管蛋白表面埋藏面积几乎加倍。
人源TBCD N端有一段保守的30个氨基酸延伸。在有Arl2时,TBCD-N的α0螺旋结合在Arl2 GTPase域顶部;在无Arl2时,α0插入TBCD N端塔状结构中原本接近Arl2结合位点的基本口袋。这解释了为什么人源系统能在短暂缺少Arl2时保持TBC-DE可溶稳定,但不能缺少TBCE。
结构还显示,Arl2核苷酸释放会诱导TBCD和TBCE构象变化:TBCD把变化传到C端螺旋区,使其向内贴近β微管蛋白,重塑β微管蛋白H10-S8环。原本在αβ异二聚体中,H10-S8环上的疏水残基与α微管蛋白结合,稳定二聚界面;当β微管蛋白单独存在时,这些残基被TBCD捕获,导致α微管蛋白结合界面不再适合α微管蛋白。β微管蛋白的H8螺旋及其连接环在β单体结构中缺失或无序,可能因为失去α微管蛋白接触。这样的结构变化把β微管蛋白锁定在“单体储存”或“拆解”状态。
研究者发现,TBC-DEGβ和TBC-DEβ结合物容易形成背靠背二聚体。低分辨率结构建模显示,这种二聚体由β微管蛋白的未占据二聚界面直接参与,形成ββ同源二聚体;可能涉及两个β微管蛋白H8螺旋交换。相比之下,TBC-DEβ也能形成侧向二聚体,但主要由TBCD介导。整体说明,β微管蛋白若暴露其α结合界面,会自发聚集形成非正常同源二聚体。
疾病突变定位分析显示,TBCD的27个致病错义突变分布在HEAT重复螺旋和螺旋末端,影响疏水堆积和β微管蛋白环绕;TBCE中CAP-Gly域突变可能破坏与α微管蛋白C端尾部结合,与Kenny-Caffey综合征相关;TBCE C末端突变可能破坏泛素样域折叠,损害与TBCD互作;Arl2突变位于N端螺旋与GTPase域交界,可能破坏核苷酸依赖构象变化。这些结构信息为相关神经和发育疾病提供分子解释。
讨论:作者提出统一的循环催化伴侣模型。TBC-DEG像一个机械化学钳子:TBCD负责抓住并重塑β微管蛋白,TBCE负责递送或移除α微管蛋白,Arl2的GTP结合/释放状态提供构象驱动力,TBCC催化GTP水解并稳定αβ界面。TBC-DEβ状态可能作为β微管蛋白储存或预组装状态。在组装方向,β微管蛋白折叠后被放入TBC-DEG,α微管蛋白经TBCB递送并由TBCE-CAP-Gly捕获,TBCE向内旋转把α微管蛋白放到β微管蛋白下方,随后界面逐步闭合,TBCC结合Arl2并促进GTP水解,最终释放成熟αβ异二聚体。在拆解方向,核苷酸释放使Arl2旋转,TBCE向外摆动,把α微管蛋白从β微管蛋白下方移走;TBCD重塑β微管蛋白界面,使其不再与α结合。
针对此前人类结构认为TBCC结合后TBCE完全脱离的争议,作者重新分析公共电子密度图,发现一个未建模但密度清晰的TBCE泛素样域,证明TBCE仍留在TBC-DEG/TBCC核心中,只是其LRR-CAP-Gly臂未解析。因此,更合理的解释是TBCE并未完全离开平台,支持循环催化伴侣模型。
作者还强调,该机制可能进化来防止ββ同源二聚体毒害。β微管蛋白过量表达会在细胞中产生有害寡聚体;TBC系统通过TBCD迅速保护β微管蛋白界面,并借助Arl2-TBCE杠杆旋转把α微管蛋白快速放到β微管蛋白上,从而维持可溶性αβ池的准确组成和微管聚合稳态。
材料与Methods部分(简化翻译):研究者通过杆状病毒系统在Sf9/Tni细胞中表达和纯化人源TBCD、TBCE、Arl2以及复合物;使用Strep标签纯化,经凝胶过滤和质谱确认组成;用质量光度法检测单体、二聚体和中间体;在接近生理条件下准备冷冻电镜样品,采集单颗粒数据,并进行运动校正、二维分类、三维分类、局部精修和模型构建。结构模型基于AlphaFold预测并结合冷冻电镜密度修正。最终模型和地图存入蛋白质数据库和电子显微学数据库。作者制作了催化循环动画,展示TBC复合物如何组装和拆解αβ微管蛋白。
总体意义:本研究把酵母和人类结构证据整合成一个多步催化循环,解释了TBC如何同时控制αβ微管蛋白合成与降解。对大众而言,微管蛋白就像搭建微管的标准化积木,而TBC复合物是“质量检查与装配机器”:它既把α和β积木配成正确的二聚体,也能拆掉错误结合,防止β积木自聚成有害废物。该机制对神经发育、纤毛功能和细胞运输相关疾病具有重要意义。
标签: TBC-DEG复合物 αβ异二聚体 冷冻电镜 微管蛋白 微管蛋白稳态