m6A修饰如何调控T细胞“休眠”状态
作者: aeks | 发布时间: 2026-11-15 12:12 | 更新时间: 2026-11-15 12:12
学科分类: 基础医学
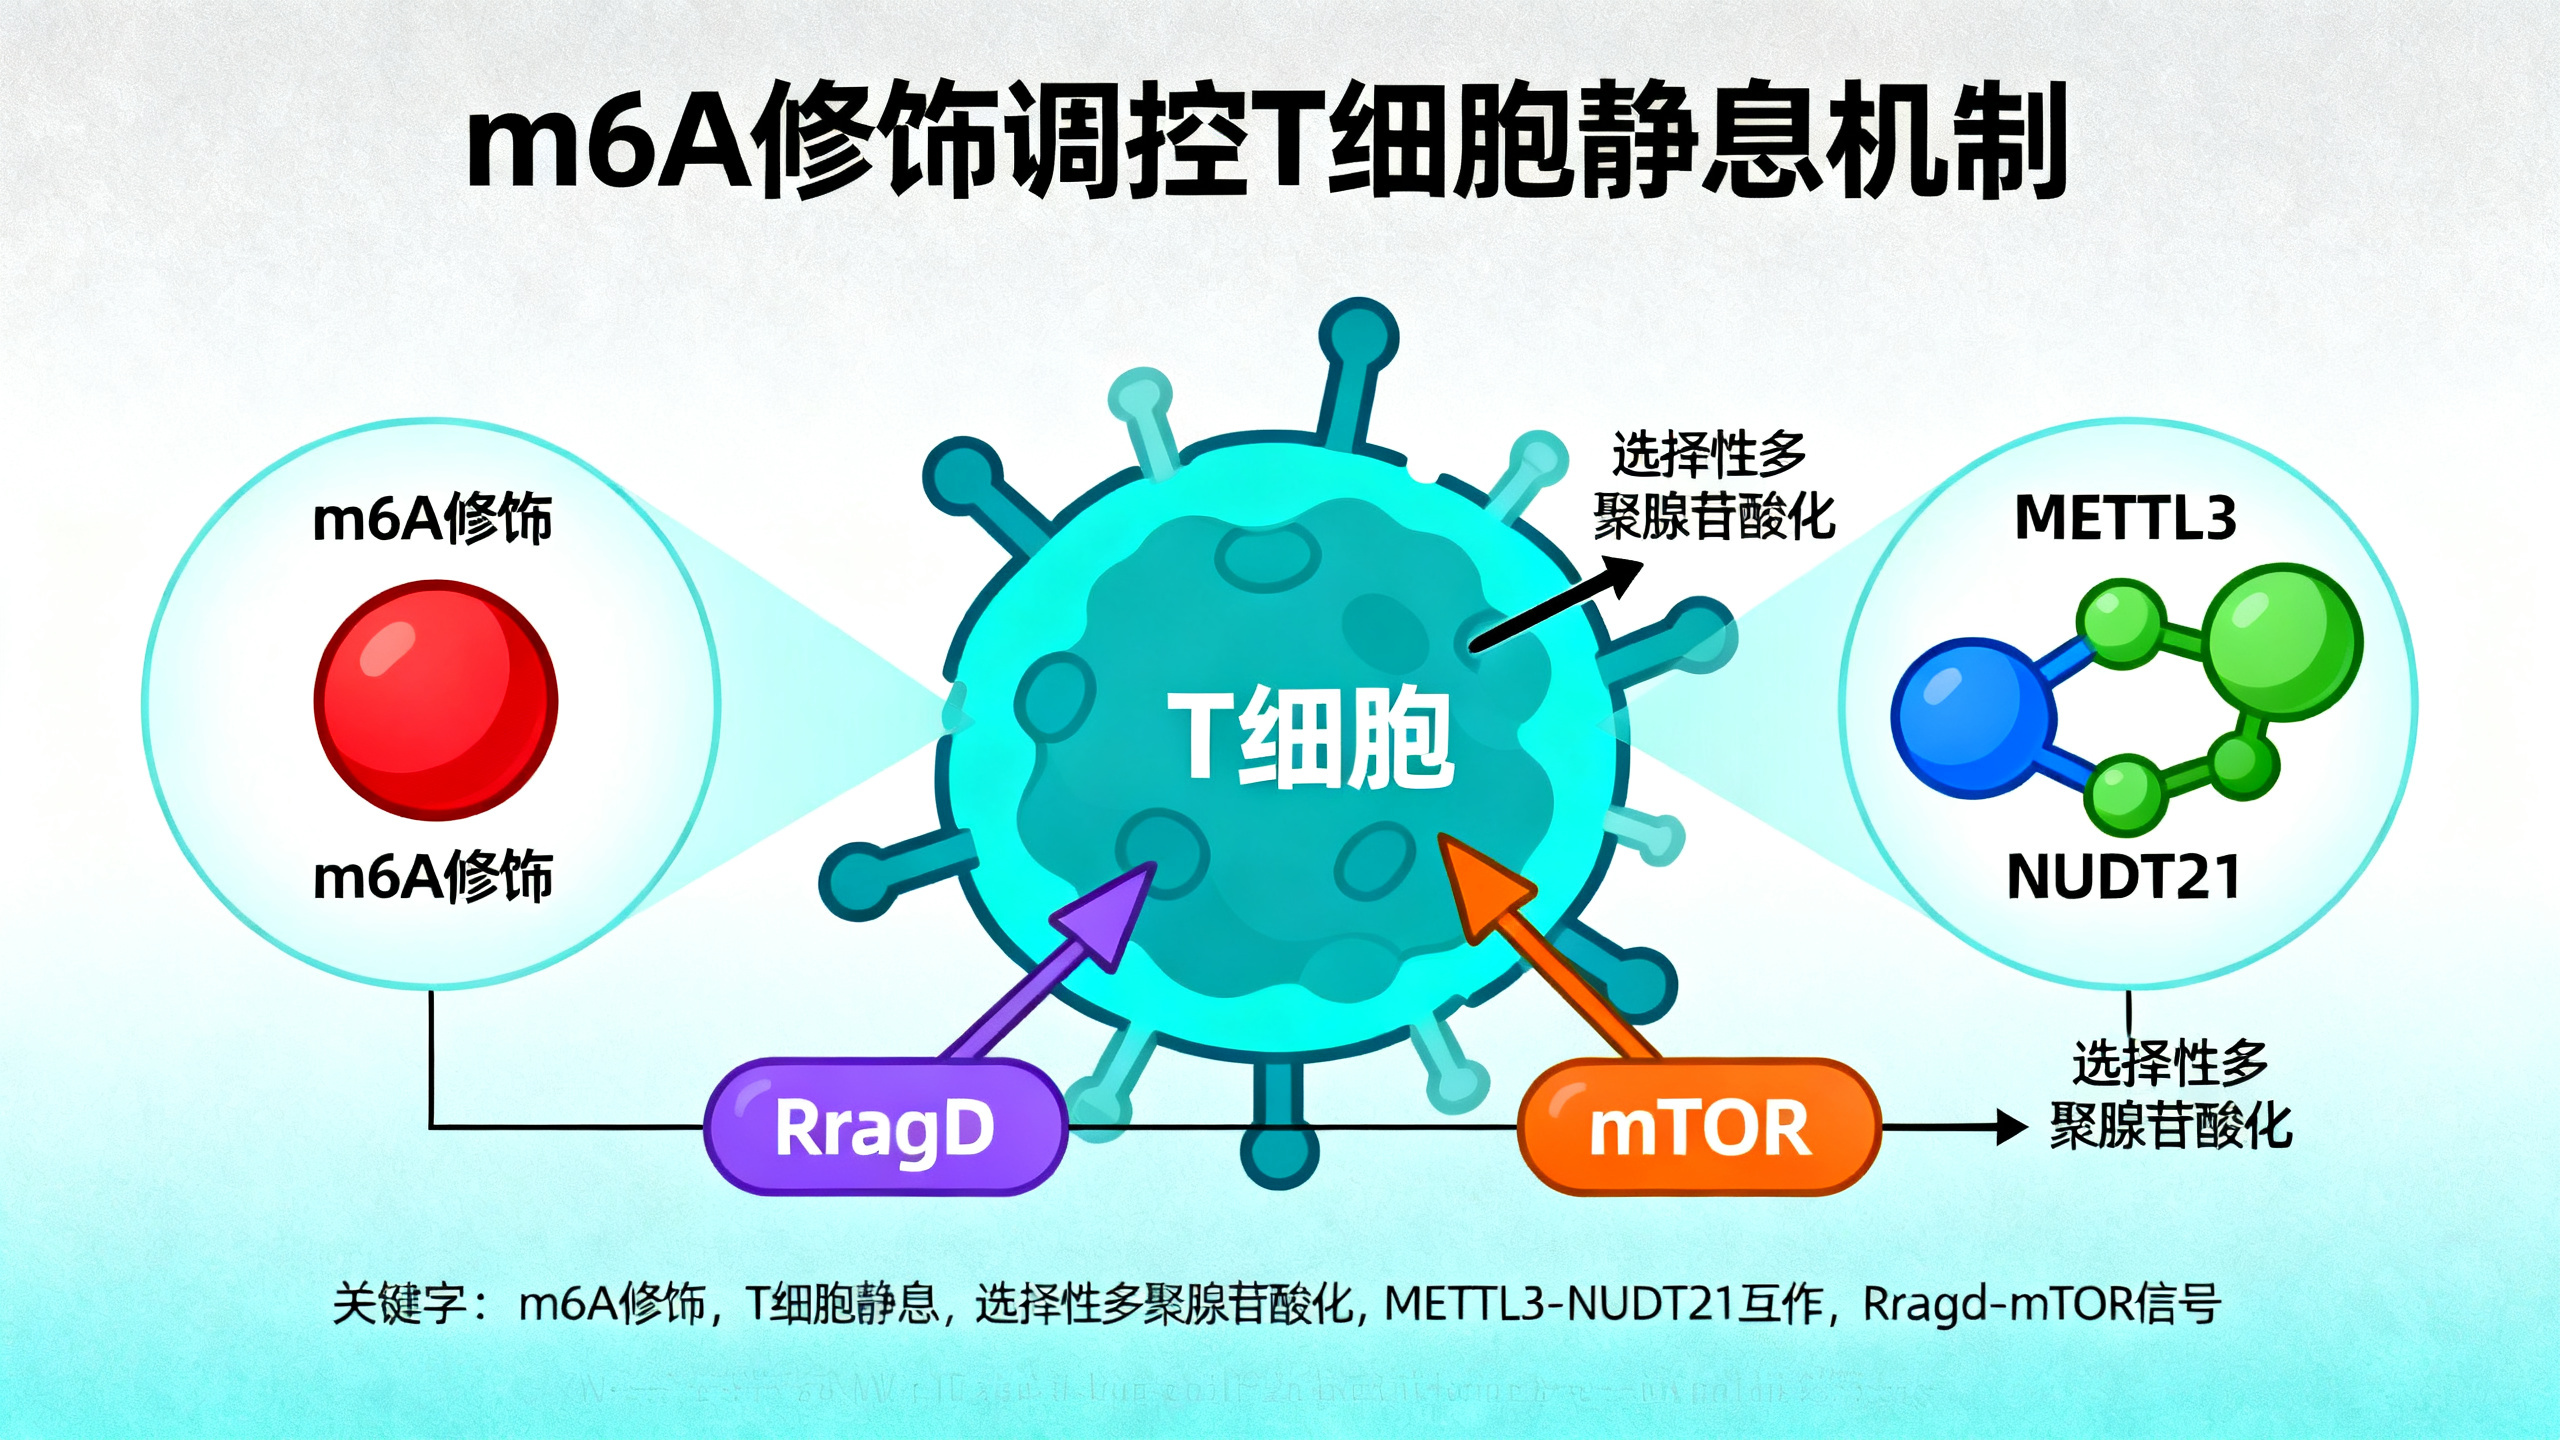
本文标题为《m6A RNA修饰指导选择性多聚腺苷酸化以维持T细胞静息》,发表于《Science Advances》第12卷第20期,DOI为10.1126/sciadv.aea4983。以下为排除网页导航、下载、推荐等无效信息后,对文章正文的中文翻译与通俗解释。
一、研究背景
T淋巴细胞是适应性免疫的核心细胞。成熟初始T细胞离开胸腺后,在没有外界抗原威胁时处于静息状态:细胞体积小、增殖率低、代谢活性低。初始T细胞的生存和稳态依赖两条信号:T细胞受体TCR识别自身肽—MHC复合物,以及白介素7受体IL7R被刺激。近年证据表明T细胞静息并非默认状态,而是由内外机制主动维持;FOXO1、KLF2、TOB、FOXP1、TSC1等转录因子以及BTG1/2等因子已参与这一过程。不过在RNA转录后调控层面,分子机制仍不清楚。
m6A是mRNA上常见化学修饰,主要富集于最后一个外显子和3′非翻译区3′UTR。它可调控基因表达。本团队此前发现m6A书写酶METTL3调控T细胞稳态和分化,m6A擦除酶ALKBH5调控自身免疫中CD4+ T细胞致病性。选择性多聚腺苷酸化APA通过选择不同多聚腺苷酸化位点PAS,改变mRNA的3′UTR长度。T细胞活化后常发生全局3′UTR缩短,但m6A和APA如何协同维持静息尚不清楚。
二、主要发现:METTL3与NUDT21直接互作并指导APA选择
研究人员用免疫沉淀质谱筛选T细胞中与METTL3相互作用的蛋白。除了m6A复合体常见成员VIRMA、METTL14、ZC3H13、WTAP、CBLL1外,还发现多个切割和APA因子与METTL3直接结合,包括NUDT21、CPSF2、RBBP6、CPSF1和CPSF3。其中NUDT21富集最强。NUDT21是哺乳动物切割因子I的25 kDa亚单位CFIm25,常被称为APA主调节因子,倾向于促进目标mRNA使用远端PAS。反向CoIP在胸腺细胞、Jurkat细胞和HEK293T细胞中证实METTL3与NUDT21直接结合;静息状态下结合略强于TCR刺激后。
随后,研究团队对初始CD4+ T细胞进行抗CD3/CD28刺激,并做RNA-seq。m6A书写酶基因Mettl3在刺激后6小时相对较早升高,而APA因子Nudt21从18小时后逐渐升高,提示m6A和APA可能在时间上协同调节靶mRNA。根据表达动态,mRNA被分为三类:第一类快速响应刺激如Mettl3,第二类随时间逐渐升高如Nudt21,第三类随时间下降。
为了观察APA变化,研究人员对静息和刺激48小时的初始T细胞做超深polyA-seq,并用PDUI反映远端PAS使用比例。结果发现,与3′UTR延长基因相比,3′UTR缩短基因数量显著更多,说明T细胞活化增殖时广泛转向使用近端PAS,这与此前研究一致。
进一步整合T细胞m6A CLIP-seq数据,研究人员发现第一类基因的m6A峰富集在近端PAS附近的最后一个外显子,说明m6A在T细胞分化早期响应基因中很重要。比较三类基因和两类PDUI变化基因后发现,在快速响应和逐渐升高基因中,没有3′UTR缩短的mRNA比缩短mRNA含有更多m6A;而且非缩短mRNA的3′UTR m6A峰靠近近端PAS。提示m6A修饰可能抑制近端多聚腺苷酸化,防止3′UTR缩短。由此提出模型:T细胞活化后,METTL3对一组上调mRNA添加m6A,随后招募NUDT21到近端PAS,阻止近端加尾,促使远端加尾并保留长3′UTR。
三、Nudt21缺失破坏外周T细胞稳态
qPCR和Western blot确认Nudt21在TCR刺激后上调,并在Th1、Th2、Th17细胞中高表达。研究构建T细胞特异性Nudt21条件敲除小鼠,将Nudt21floxflox小鼠与CD4-Cre小鼠交配获得Nudt21cKO。静息状态下,胸腺中总T细胞数量、比例和亚群发育正常,说明NUDT21不决定胸腺发育。但在脾脏、淋巴结和肠系膜淋巴结中,Nudt21cKO小鼠的CD4+ T和CD8+ T细胞显著减少,CD4+/CD8+比例改变。外周血、肝和肺中T细胞频率也下降,提示减少不是单纯归巢异常,而是T细胞整体丢失。
在Nudt21cKO小鼠外周免疫器官中,初始T细胞数量和比例下降,效应记忆T细胞比例升高,提示稳态和静息异常。为判断NUDT21是否细胞自主起作用,研究者将野生型CD45.1+骨髓与野生型或Nudt21cKO CD45.2+骨髓按1:1输入受致死量照射的Rag1−/−小鼠重建嵌合体。结果显示,来源于Nudt21cKO供体的CD4+和CD8+ T细胞少于野生型供体,证明NUDT21以细胞内在方式维持外周T细胞数量。
四、Nudt21缺失减轻T细胞介导炎症但削弱抗肿瘤免疫
研究者把初始CD4+ T细胞过继转移到Rag2−/−淋巴细胞减少小鼠中诱导过继转移性结肠炎。接受野生型初始T细胞的小鼠逐渐体重下降并出现结肠炎症、CD3+ T细胞浸润和结构破坏;接受Nudt21缺失T细胞的小鼠在整个实验中持续增重,内镜和病理检查无结肠炎证据,结肠和免疫器官中供体CD4+ T细胞显著减少,且更多凋亡。说明NUDT21通过控制T细胞存活和增殖影响炎症。
在实验性自身免疫性脑脊髓炎EAE模型中,Nudt21cKO小鼠和野生型小鼠经MOG3555和百日咳毒素免疫。野生型小鼠出现严重进行性瘫痪、脊髓炎症浸润和脱髓鞘;Nudt21cKO小鼠症状极轻,几乎无中枢神经炎症和脱髓鞘,进一步证明NUDT21对T细胞功能不可或缺。
相反,在MC38结肠癌肿瘤模型中,Nudt21cKO小鼠肿瘤体积和重量显著增大,肿瘤浸润CD4+和CD8+ T细胞减少,产生干扰素γ的效应性T细胞比例下降。由于静息T细胞库是有效抗肿瘤免疫的前提,NUDT21缺失导致T细胞耗竭或丢失,从而损害抗肿瘤免疫。
五、Nudt21缺失导致过度活化诱导的细胞死亡
Nudt21缺失的CD4+和CD8+ T细胞体积比野生型大,体内BrdU掺入更多,提示初始T细胞自主脱离静息并进入增殖。体外抗CD3/CD28刺激后,Nudt21缺失T细胞克隆扩张更快,CD44高、CD62L低,活化表型更强;Th1和Th17分化潜力与野生型相似。尽管增殖增强,外周T细胞池仍变小,原因是凋亡增加。Nudt21缺失T细胞在静息和刺激后裂解型Caspase3升高,早期和晚期凋亡细胞显著增多。骨髓嵌体也验证其增殖增强但凋亡过度。
六、NUDT21通过3′UTR长度和mTOR通路维持静息
TCR信号分析显示,NUDT21缺失仅轻微增加ERK磷酸化,不影响p65和IkBa磷酸化;用PMA/ionomycin绕过近端TCR步骤时,ERK、JNK、p38、p65和IkBa磷酸化无明显差异。为系统寻找机制,对Nudt21缺失和野生型初始CD4+ T细胞做超深polyA-seq。上调基因富集于T细胞活化、增殖、效应分子、细胞周期、趋化信号和活化诱导细胞死亡通路。Nudt21缺失导致大多数mRNA 3′UTR缩短,缩短事件约1319个,延长事件仅33个。3′UTR缩短基因富集在mTOR信号通路,而mTOR对初始T细胞静息和稳态很重要。
mTORC1下游效应蛋白磷酸化水平在Nudt21缺失T细胞中升高,包括S6K1、核糖体蛋白S6和4EBP1;mTORC1激活相关转运体CD71和CD98也升高。用mTORC1抑制剂雷帕霉素处理可逆转静息丧失:细胞体积增大被抑制,增殖减少,CD44、CD25和LAG3表达降低。结论:NUDT21直接抑制mTORC1活性,维持T细胞静息。
七、Rragd是METTL3和NUDT21共同调控的关键mRNA
研究者比较Mettl3缺失和Nudt21缺失的polyA-seq,发现34个基因在两者中均出现3′UTR缩短,提示m6A和APA共同调控。其中mTORC1组分Rragd编码RagD GTP酶受到关注。NUDT21缺失后,Rragd 3′UTR远端区域读段密度显著降低,qRT-PCR证明远端PAS使用减少和3′UTR缩短;同时Rragd总mRNA和RagD蛋白水平升高。RagD蛋白可与RagA或RagB形成异源二聚体,促进mTORC1转运至溶酶体并过度激活,导致T细胞静息丧失和凋亡。敲低Rragd能部分缓解Nudt21缺失造成的凋亡。
进一步分析m6A如何调控Rragd。m6A CLIP和m6A RIP-qPCR显示Rragd 3′UTR广泛存在m6A峰。RIP-qPCR证明METTL3结合Rragd近端PAS,而NUDT21同时结合近端和远端PAS。在Mettl3敲低细胞中,重新表达催化活性正常的METTL3可恢复Rragd和Ccl25的长3′UTR,但催化突变体效果弱;Mettl3敲低也降低NUDT21在PAS位点的结合。Nudt21缺失导致Rragd m6A水平下降,放线菌素D追踪显示其mRNA更稳定或水平升高。Mettl3条件敲除小鼠同样出现Rragd mRNA和RagD蛋白升高。由此确定:NUDT21依赖METTL3介导的m6A修饰调控Rragd mRNA稳定性和表达。
八、讨论与意义
该研究提出了一个正反馈模型:METTL3在特定mRNA最后一个外显子沉积m6A,并招募NUDT21到近端PAS附近;NUDT21阻止近端加尾,使这些转录本保留长3′UTR和m6A位点;长3′UTR中的m6A又促进适度降解,从而限制RragD等蛋白表达,控制mTORC1活性。与作者此前发现m6A诱导早期基因降解是松开T细胞静息刹车、m1A增强翻译效率是踩下增殖油门相比,本研究表明m6A还指导另一组转录本的APA选择,充当T细胞过度活化的限速器。
Nudt21缺失会使T细胞在静息状态下过度活化并大量凋亡,结果既减轻结肠炎和EAE等T细胞介导炎症,又损害抗肿瘤免疫。研究揭示了m6A与APA串扰在体内维持T细胞稳态的机制,也为靶向APA机器治疗自身免疫病、或通过增强NUDT21功能提高CAR-T长期存活和疗效提供思路。
九、材料与方法要点
动物:Mettl3条件敲除小鼠通过CRISPRCas9在第一和最后内含子插入loxP位点获得;Nudt21条件敲除小鼠由供应商构建,在第二或第三外显子两侧插入loxP。Nudt21cKO小鼠为Nudt21floxflox与CD4Cre交配后代,以同窝性别匹配Nudt21floxflox作为野生型对照。骨髓嵌合体通过1×10⁷细胞混合野生型CD45.1+骨髓与野生型或Nudt21cKO CD45.2+骨髓,输入受9.5 Gy致死量照射的Rag1−/−小鼠构建。小鼠在无特定病原条件下饲养,动物实验经上海交通大学医学院相关委员会批准。
细胞:MC38结肠癌细胞、HEK293T细胞和Jurkat T细胞购自ATCC。MC38和HEK293T用含10%胎牛血清和1%青霉素链霉素的DMEM培养;Jurkat用同样添加的RPMI1640培养。细胞经检测无支原体污染。
细胞分离与流式:脾脏、胸腺和淋巴结经研磨和100 μm滤网过滤,裂解红细胞后用BD LSRFortessa检测,FlowJo分析。
抗体与试剂:包括Caspase3、pS6、MycTag、GAPDH、pS6K1、p4EBP1、Actin、Nudt21、Ragd、Mettl3、HATag、抗m6A抗体,以及流式抗体和雷帕霉素。
疾病模型:过继转移结肠炎将5×10⁵纯化的初始CD4+ T细胞静脉输入Rag2−/−小鼠,每周称重,结肠镜按粪便性状、血管、黏膜颗粒度和透光性评分;EAE用MOG3555与完全弗氏佐剂皮下免疫并注射百日咳毒素,按0至5级评分,结束后取脊髓做H&E和LFB染色。
测序与数据分析:总RNA用TRIzol提取,由Novogene测序,每样本超过1亿reads。使用hisat2比对小鼠基因组mm10,StringTie定量表达,DAVID和IPA分析通路。APA用DaPars鉴定替代近端PAS并计算PDUI,以FDR小于0.05和PDUI变化大于0.1为显著。m6A数据来自GEO中m6A-miCLIP SMARTer-seq或本地CLIP处理,deeptools计算峰覆盖,APADB提供PAS位置。相关性分析用FPKM标准差筛选可变基因,Mfuzz聚类。
分子实验:远端PAS使用用qRT-PCR检测,以远端转录本/总转录本比值表示;RNA稳定性用放线菌素D处理0、2、4、8小时后qRT-PCR评估;m6A RIP-qPCR用抗m6A磁珠免疫沉淀;Western blot和IP使用蛋白酶/磷酸酶抑制剂裂解液;质谱从抗Mettl3沉淀物中鉴定互作蛋白;统计用GraphPad Prism,t检验或双因素方差分析,数据以均值±标准误表示,P小于0.05为显著。
致谢与资助:作者感谢实验室成员讨论和技术核心平台支持。研究获中国国家重点研发计划、国家自然科学基金、重庆市科技和教育相关部门、上海和湖南相关基金等资助。作者声明无利益冲突。本研究生成的polyA-seq数据已提交GEO,新小鼠和细胞材料可向通讯作者申请。